Parole chiave: Genetica, bioelettricità, chemogenetica, interdisciplinarietà, Nobel, optogenetica
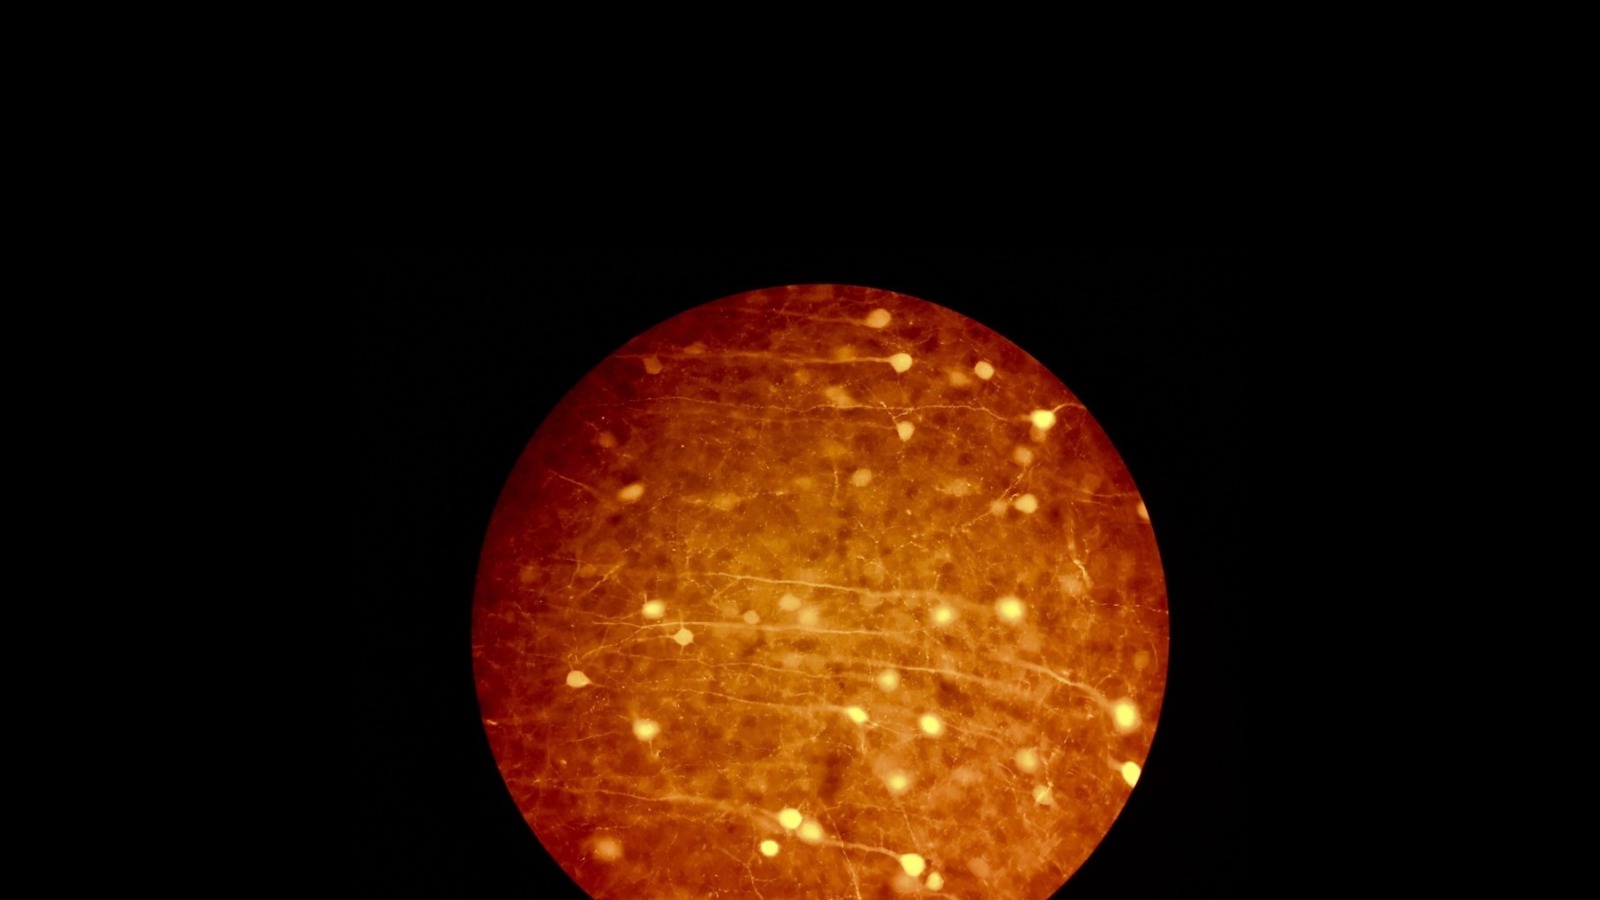
Interstellar Neurons — L. Demarchi, I. Bertocchi e A. Oberto, 2019
FARE LUCE SUI NEURONI.
I PREMI NOBEL PER LA MEDICINA 2026
Amedeo Falci
Un resoconto storico e scientifico delle ricerche sull’optogenetica che hanno portato all’assegnazione dei premi Nobel 2026 per la Medicina e la Fisiologia a Deisseroth, Hegemann e Nagel. Alcune considerazioni psicoanalitiche sul nuovo paradigma di ricerca neuroscientifica.
_____
Karl Deisseroth, professore di Bioingegneria, Psichiatria e Scienze comportamentali presso l’Howard Hughes Medical Institute e la Stanford University (USA), Peter Hegemann, professore di Neuroscienze presso l’Università Humboldt di Berlino, e Georg Nagel, professore di Fisiologia molecolare delle piante presso l’omonimo Dipartimento, e professore di Biofisica dell’Università di Würzburg, sono stati congiuntamente insigniti del premio Nobel per la Medicina e la Fisiologia nel 2026.
Merita di essere brevemente narrato il lungo percorso che ha condotto alle loro scoperte e alla nuova straordinaria metodologia di ricerca, proprio in quanto esemplare risultato di una cooperazione interdisciplinare tra botanica, neuroingegneria e neuroscienze, a testimonianza del sempre più alto livello di integrazione tra vari campi per studi avanzati.
L’impresa scientifica ebbe inizio una trentina di anni fa, quando Hegemann ipotizzò che nella macchia oculare dell’alga unicellulare Chlamydomonas — utilizzata per orientarsi verso le sorgenti luminose indispensabili per la fotosintesi — vi fosse una proteina capace di reagire alla luce e di aprire un canale ionico nella membrana cellulare, tale da generare un impulso elettrico entro 0,2 millisecondi per attivare l’apparato che governa il movimento dei flagelli. Un potenziale d’azione straordinariamente più veloce, per fare un confronto, della risposta alla luce nell’occhio umano che richiede almeno 10 millisecondi.
Qualche anno più avanti, Nagel, sulla scia della scoperta di Hegemann, iniettò separatamente copie di geni dell’alga in uova di rana, le quali iniziarono a produrre due proteine sconosciute che si localizzarono nella membrana cellulare: canalrodopsina-1 e canalrodopsina-2. Solo la seconda reagì in modo eccezionalmente forte e rapido ad un impulso luminoso di luce blu. Quest’ultima è una radiazione elettromagnetica ad alta energia, tra i 380 e i 500 nanometri, prodotta dal sole, ma anche dai dispositivi elettronici comunemente utilizzati, con effetti sia positivi che negativi sulla fisiologia umana, oltre a svolgere un importante ruolo nella fisiologia vegetale (Chamovitz, 2012). La canalrodopsina-2, in effetti, attivata dalla luce blu, permise l’apertura di un canale ionico sulla superficie dell’ovocita di rana con una velocissima depolarizzazione ed attivazione bioelettrica.
Hegemann e Nagel, nel 2002, 2003, e con una revisione nel 2013, pubblicarono, quindi, i risultati definitivi delle loro scoperte, confermando come l’introduzione del gene della canalrodopsina-2 anche in cellule renali embrionali umane ed in cellule renali di criceto determinasse la stessa fotosensibilità che generava un segnale elettrico.
Fu merito di Deisseroth la prima accensione della luce nei neuroni. Neuroscienzato, ma anche psichiatra con una certa esperienza clinica, egli provò a trasferire la scoperta nell’ambito della neurofisiologia. La dimostrazione diretta che l’attivazione di canalrodopsina-2 mediante luce blu fosse in grado di innescare chiari potenziali d’azione in cellule nervose dove erano stati impiantati i geni per la proteina, venne fornita, appunto, dal suo gruppo di ricerca (Boyden, Deisseroth, Nagel, et al., 2005). Questo primo passo fu fondamentale per la definizione di optogenetica, un costrutto che — come scritto nello Scientific background 2026 of Optogenetics della Nobelförsamlingen vid Karolinska Institutet (Assemblea Nobel dell’Istituto Karolinska) — “… trasformò l’idea speculativa che la luce potesse controllare l’attività dei neuroni, in una realtà sperimentalmente verificabile”.
Poco più tardi arrivò la definitiva conferma ufficiale (Deisseroth, Feng et al., 2006; Zhang, Nagel, Deisseroth et al., 2007) di come la fotostimolazione optogenetica diretta e selettiva di singoli neuroni, attraverso un elettrodo inserito sul solo neurone geneticamente modificato, senza coinvolgere le zone neurali circostanti, registrasse con precisione assoluta e al millisecondo, l’attivazione bioelettrica di cui potevano essere seguite le propagazioni lungo gli assoni.
Un definito articolo di Deisseroth (2015) comprovò la validità sperimentale dell’optogenetica come un sistema per l’analisi interamente ottica, multimodale, ad alta velocità e geneticamente mirata, di circuiti neurali viventi. Da qui, negli anni successivi, l’avvio di fitte collaborazioni scientifiche sul tema tra vari gruppi internazionali, dove erano presenti, sia pure separatamente, i tre autori adesso premiati.
Un lavoro di Liu, Deisseroth ed altri (2012), avviava una prospettiva di studio più ampia sulle dinamiche neurali di cognizioni ed emozioni, utilizzando, nei roditori, l’optogenetica per riattivare i percorsi neurali di un ricordo di paura anche quando il pericolo era cessato, mostrando, in tal modo, la possibilità di accesso, attraverso tale metodologia di ricerca, a organizzazioni neurali più strutturate, come i circuiti della memoria.
Lavorando in questa direzione, la possibilità di isolare optogeneticamente specifici insiemi funzionali permetteva di seguire con più accuratezza le separate connessioni neuromodulatrici nei sistemi di ricompensa, avversione e salienza da parte dei neuroni dopaminergici del mesencefalo (Schultz, 2007; Bromberg-Martin et al., 2010; Ungless et al., 2010), collocati in una zona di difficile studio per le sovrapposizioni anatomiche di nuclei e circuiti neurali. Si scopriva, per l’appunto, come malgrado tale fitto concentramento in queste regioni, vi fosse una discriminazione tra alcune afferenze al mesencefalo che mediano risposte di ricompensa, ed altre afferenze che mediano l’avversione (Lammel, Malenka, Deisseroth et al., 2012). Ancora più sorprendentemente, la metodologia optogenetica permetteva di distinguere con precisione le differenti origini neurobiologiche di stati emotivi spesso clinicamente accostati, come la paura e l’ansia (Ciocchi, Deisseroth et al., 2010; Haubensak, Deisseroth et al., 2010; Johansen, Deisseroth et al., 2010; Stuber, Deisseroth et al., 2011; Kim, Adhikari, Deisseroth et al., 2013; Adhikari, Deisseroth et al., 2015). Si registrava, infatti, come una marcata riduzione degli stati di ansia fosse dovuta ad alcune specifiche proiezioni (dall’amigdala basolaterale all’amigdala centrale) (Tye, Deisseroth et al., 2011), mentre un aumento marcato degli stati ansiosi fosse dovuto ad altre diverse proiezioni (dall’amigdala basolaterale all’ippocampo ventrale) (Felix-Ortiz et al., 2013). Così come si evidenziava che l’evitamento comportamentale del rischio fosse generato da proiezioni (dal nucleo del letto della stria terminale verso l’ipotalamo laterale mediano) differenti da quelle relative alla valutazione positiva del rischio (dal nucleo del tetto verso l’area tegmentale ventrale) (Kim, Adhikari, Deisseroth et al., 2013).
Quali le possibili frontiere cliniche dall’applicazione delle metodologie optogenetiche? Pur accennando solo ai promettenti risultati nel campo della retinite pigmentosa (Bi et al.; 2006; Ivanova et al., 2010; Gauvain et al., 2021; Sahel et al., 2021), è nel campo delle organizzazioni mentali complesse, come cognizione ed emozioni, che l’optogenetica rappresenta un nuovo dispositivo tecnico e metodologico capace di accrescere notevolmente le nostre conoscenze.
Come tradurre, quindi, questi ‘aridi’ dati che possono sembrare ben lontani dal linguaggio psicoanalitico (ma, in realtà, molto meno lontani di quanto non possa sembrare)? Avanzerei alcuni primi commenti.
A) Sul piano neuroscientifico è adesso possibile indagare sulle funzioni cognitive ed emotive ai livelli incredibilmente dettagliati dei singoli neuroni e delle relative connessioni. Questo apre inediti avanzamenti nel campo delle correlazioni tra neurobiologia e funzioni mentali; come si è visto a proposito degli stringenti rapporti tra particolari circuiti neurali e varietà emozionali. Si offrono, dunque, alla psicoanalisi inedite possibilità di investigazione sulle interazioni corpo-mente in grado di portarci molto più avanti, e molto più approfonditamente, rispetto alla vaga affermazione che “il somatico è il vero e proprio psichico” (Freud, 1938).
B) Da un punto di vista epistemico e filosofico, il percorso che ha condotto all’optogenetica mostra la stupefacente similarità e continuità dei processi di linguaggio ed informazione tra mondo vegetale, animale, umano. Una proteina fotosensibile delle alghe può essere trasferita, allocata ed integrata nella biologia di un neurone, dove può ‘leggere’ un segnale. Si tratta di nuovi orizzonti nello studio della mente che riconfermano e rilanciano, per la psicoanalisi, i programmi di quella psicologia scientifica naturale di Freud (die naturwissenschaftliche Psychologie, 1895), che va certo declinata, oggi, in riferimento alle scienze attuali, e non più a quelle ottocentesche.
C) Le molteplici connessioni funzionali neurali delle modulazioni emotive chiariscono e spiegano maggiormente la complessità dell’ampio e variegato spettro di emozioni che emerge nella clinica psicoanalitica contemporanea, rispetto alla semplificazione degli affetti fondamentali che è nel modello pulsionale.
D) Sul piano neurobiologico, gli stati emotivi non vengono confermati come quantità affettive energetiche, ma come espressioni somato-psichiche di specifici circuiti neuronali che hanno flessibilità adattive e funzioni di omeostasi-regolazione-segnalazione, sia verso l’ambiente interno (richiamerei l’anticipatorio Ichsignal, formulato da Freud nel 1925), sia verso l’ambiente esterno (segnali intersoggettivi e sociali).
E) Lo studio optogenetico dei funzionamenti neurobiologici potrebbe costituire un contributo ad una decostruzione e revisione delle grandi categorie cliniche. Alcuni stati psichici a lungo considerati come specifici quadri unitari, potrebbero ora essere sperimentalmente attribuiti a circuiti neurobiologici autonomi che possono attivarsi in più occorrenze psicopatologiche. Un eccellente esempio può essere fornito dai disturbi ossessivo-compulsivi, a lungo ritenuti un peculiare quadro nevrotico. In realtà, più che come categoria a sé stante, essi si collocano in uno spettro dimensionale ampio, da semplici ritualità fino a idee e compulsioni ego-aliene, spesso con uno sfondo delirante e psicotico, diffusi in comorbilitá con molte psicopatologie, anche gravi. La loro presenza trasversale in varie psicopatologie, confuterebbe lo statuto di una distinta ed omogenea nevrosi, e potrebbe esser meglio compresa dalla sua correlazione con la disfunzionalità del circuito cortico-striatale-talamo-corticale (CSTC) (Ting, Feng, 2011), presente in associazione a vari disordini neurobiologici. Da qui la possibile utilizzazione dell’optogenetica per una visualizzazione diretta in vivo delle logiche connessionistiche di molti disordini mentali, tale da poter portare ad una revisione degli attuali raggruppamenti psicopatologici e nosografici.
Come scrive la Nobelförsamlingen vid Karolinska Institutet, questo nuovo metodo di ricerca “ha anche trasformato le neuroscienze, che stanno passando dall’osservazione e dalla lettura delle attività neurali, alla possibilità di ‘trascrivere’ attivamente su di esse attraverso applicazioni della chemogenetica. Si tratta di una strategia tecnica che unisce genetica e chimica per la modulazione dell’attività di specifici neuroni. In cellule bersaglio si inseriscono proteine ingegnerizzate come recettori insensibili ai neurotrasmettitori endogeni, ma altamente reattivi a molecole sintetiche successivamente somministrate, che fungono da interruttori. Il legame tra il recettore ingegnerizzato e la molecola sintetica disattiva di conseguenza le funzioni cellulari fisiologiche. La possibilità di agire per via sistemica, senza intrusività fisica neurale, attraverso tali disattivazioni, permetterebbe una neuromodulazione prolungata (Sternson e Roth, 2014) di circuiti cerebrali ampi e diffusi, con un potenziale impiego nel cervello umano per contrastare biologicamente diverse psicopatologie umane.”
In conclusione, riplanando sulla psicoanalisi, certamente sappiamo bene come essa sia altamente specializzata nella comprensione di processi mentali inconsci indagabili attraverso transfert, controtransfert, comunicazioni emozionali e linguaggio, a prescindere dalle implicazioni neurobiologiche e funzionali del sistema nervoso, data l’impossibilità di potere fissare delle leggi rigorose che leghino forme di pensiero complesso e astratto ed immaginazioni con leggi fisiche deterministiche (anomalous monism, Davidson, 1970). Ma, al contempo, la stessa psicoanalisi non può non riconoscere lo statuto di sopravvenienza (supervenience, Davidson 1970) dei processi mentali rispetto al biosomatico, vale a dire il loro essere sovraordinati rispetto ad altri eventi basilari, neurofunzionali, che li rendono possibili. Asse fondativo che attraversa tutta la psicoanalisi, e che troviamo inoppugnabilmente in due affermazioni che si collocano esattamente all’apertura e alla chiusura della lunga scrittura freudiana.
“Lo psichico è quindi un processo in parallelo e «dependent concomitant» del neurologico”. (Freud, 1891, 57)
“[…] i presunti processi concomitanti di natura somatica costituiscono il vero e proprio psichico”. (Freud, 1938, 585.)
Nondimeno occorre anche ammettere come la comprensione psicoanalitica dei processi biologici alla base di processi neurali strutturati – quali azioni, pensiero, immaginazioni, emozioni – sia stata finora limitata dalla disponibilità di strumenti in grado di analizzare specifiche classi di cellule neurali e specifici circuiti all’interno di tessuto cerebrale vivo e integro. Ma adesso, di fronte a nuovi strumenti di indagine e a nuove evidenze che hanno avuto un così importante riconoscimento dalla comunità scientifica internazionale, il dibattito sulla sopravvenienza del mentale al biologico e sui nessi tra schemi circuitali distribuiti, stati emozionali e processi cognitivi, si potrà certo avvalere di nuovi dati e nuovi argomenti. Al centro non vi è solo un dibattito tra opinioni legittimamente divergenti, ma la più fondamentale questione della tutela del ruolo della scienza nelle discipline che si occupano della mente.
________
Bibliografia
- Adhikari, A., Deisseroth, K., et al. (2015). Basomedial amygdala mediates top-down control of anxiety and fear. Nature, 527(7577):179-185.
- Bi, A., et al. (2006). Ectopic expression of a microbial-type rhodopsin restores visual responses in mice with photoreceptor degeneration. Neuron, 50:23-33.
- Boyden, E.S., Deisseroth, K., Nagel, G., et al. (2005). Millisecond-timescale, genetically targeted optical control of neural activity. Nat Neurosci, 8(9):1263-1268.
- Bromberg-Martin, E.S., et al. (2010). Dopamine in motivational control: rewarding, aversive, and alerting. Neuron, 68:815-834.
- Chamovitz, D. (2012). Quel che una pianta sa. Guida ai sensi nel mondo vegetale. Cortina, Milano, 2013.
- Ciocchi, S., Deisseroth, K., et al. (2010). Encoding of conditioned fear in central amygdala inhibitory circuits. Nature, 468(7321):277-282.
- Davidson, D. (1970). Eventi mentali. In: D. Davidson, Azioni ed eventi. Il Mulino, Bologna 1992.
- Deisseroth, K. (2015). Optogenetics: 10 years of microbial opsins in neuroscience. Nat Neurosci,18:1213-1225.
- Deisseroth, K., Feng, G., et al. (2006). Next-Generation Optical Technologies for Illuminating Genetically Targeted Brain Circuits. J Neurosc, 26 (41):10380-10386.
- Felix-Ortiz, A.C., et al. (2013). BLA to vHPC inputs modulate anxiety-related behaviors. Neuron, 79:658-664.
- Freud, S. (1891). L’interpretazione delle afasie, a cura di F. Napolitano. Quodlibet, Macerata-Roma, 2010.
- Freud, S. (1895). Progetto per una psicologia. OSF, II.
- Freud, S. (1925). Inibizione, sintomo e angoscia. OSF, X.
- Freud, S. (1938). Compendio di psicoanalisi. OSF, XI.
- Gauvain, G, et al. (2021). Optogenetic therapy: high spatiotemporal resolution and pattern discrimination compatible with vision restoration in non-human primates. Commun Biol, 4(1):125.
- Haubensak, W., Deisseroth, K., et al. (2010). Genetic dissection of an amygdala microcircuit that gates conditioned fear. Nature, 468(7321):270-276.
- Hegemann, P., Nagel, G. (2013). From channelrhodopsins to optogenetics. EMBO Mol Med., 5:173-176.
- Ivanova, E., et al. (2010). Evaluation of AAV-mediated expression of Chop2-GFP in the marmoset retina. Invest Ophthalmol Vis Sci, 51:5288-5296.
- Johansen, J.P., Deisseroth K., et al. (2010). Optical activation of lateral amygdala pyramidal cells instructs associative fear learning. Proc Natl Acad Sci U S A, 107:12692-12697.
- Kim, S.Y., Deisseroth, K., et al. (2013). Diverging neural pathways assemble a behavioural state from separable features in anxiety. Nature, 496(7444):219-223.
- Lammel, S., Malenka, R.C., Deisseroth, K., et al. (2012). Input-specific control of reward and aversion in the ventral tegmental area. Nature, 491(7423):212-7.
- Liu, X., Deisseroth, K., et al. (2012). Optogenetic stimulation of a hippocampal engram activates fear memory recall. Nature, 84(7394):381-385.
- Nagel, G., Hegemann, P. et al. (2002). Channelrhodopsin-1: a light-gated proton channel in green algae. Science, 296:2395-2398.
- Nagel, G., Hegemann, P., et al. (2003). Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. Proc Natl Acad Sci U S A, 100:13940-13945.
- Nobelförsamlingen vid Karolinska Institutet (Assemblea Nobel dell’Istituto Karolinska) (2026). Optogenetics Discovery of a neuronal switch. Scientific background 2026. (On-line)
- Sahel, J.A., et al. (2021). Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med, 27:1223-1229.
- Schultz, W. (2007). Multiple dopamine functions at different time courses. Annu Rev Neurosci, 30:259-288.
- Sternson, S.M., Roth, B.L. (2014). Chemogenetic tools to interrogate brain functions. Annu Rev Neurosci, 37:387-407.
- Stuber, G.D., Deisseroth, K., et al. (2011). Excitatory transmission from the amygdala to nucleus accumbens facilitates reward seeking. Nature, 475(7356):377-380.
- Ting, J. T., Feng, G. (2011). Neurobiology of obsessive-compulsive disorder: insights into neural circuitry dysfunction through mouse genetics. Curr Opin Neurobiol, 21(6): 842–848.
- Tye, K.M., Deisseroth, K., et al. (2011). Amygdala circuitry mediating reversible and bidirectional control of anxiety. Nature, 471(7338):358-362.
- Ungless, M.A., et al. (2010). Effects of stress and aversion on dopamine neurons: implications for addiction. Neurosci Biobehav Rev, 35:151-156.
- Zhang, F. Nagel, G., Deisseroth, K., et al (2007). Multimodal fast optical interrogation of neural circuitry. Nature, 446(7136):633-639.
_______